Рубцевание · регенерация · научный перевод и редакционный разбор
Почему организм образует рубец вместо полноценной ткани
Фибробласты, фасция, механические силы и молекулярные «часы» раны: как разные клеточные программы приводят к регенерации, фиброзу или хроническому незаживлению.
Поделиться
Короткая версия 2 минуты чтенияОткуда берётся рубец и что следует знать массажисту
Редакционное резюме VesninMed · Можно прочитать отдельно от обзора
Рубец — итог клеточных решений, а не просто скопление коллагена
О чём обзор. Аграмунт, Кан и Ринкевич объединили результаты исследований заживления кожи у млекопитающих. Это научный обзор, а не клинический эксперимент по массажу. Авторы предлагают понимать восстановление как сочетание времени и места: что происходит в первые дни и недели, но также на краю и в центре раны, в эпидермисе, дерме и глубоких соединительных тканях.
Главное открытие исследований. Фибробласты неоднородны: поверхностные, глубокие и фасциальные популяции выполняют разные задачи. Часть клеток переходит в миофибробласты — сократительное состояние, помогающее закрывать дефект. Если эта программа сохраняется слишком долго, избыточное образование матрикса может способствовать фиброзу.
Как запускается смена программ. В экспериментальных моделях ранний сигнал ретиноевой кислоты (RA) связан с образованием провоспалительных фибробластов и привлечением иммунных клеток. Затем в участках с недостатком кислорода увеличивается активность HIF-1α, поддерживающего переход к миофибробластам. Эти сигналы должны действовать в определённом месте и в определённое время. Указанные в статье дни — не универсальное расписание человеческого заживления.
Почему механика важна. Натяжение и жёсткость матрикса клетки воспринимают через интегрины, цитоскелет и сигнальные пути вроде FAK и YAP/TAZ. Это называется механотрансдукцией. Однако факт существования этого механизма не означает, что ручное разминание способно направленно изменить судьбу фибробластов.
Что взять массажисту. Отличайте облегчение боли или зуда от доказанного изменения структуры рубца. Не следует обещать «разрушить спайки» или «перестроить коллаген» на основании лабораторных схем. При работе с рубцами важны возраст и состояние ткани, безопасность, чувствительность, функция и отдельная оценка доказательств для каждого вмешательства.
Первоисточник, авторы и условия перевода
Научный перевод с редакционным сопровождением. Материал создан на основе обзорной статьи Julià Agramunt, Yuanbo Kang, Yuval Rinkevich — Spatiotemporal dynamics of mammalian wound healing. Cell Discovery, 12, article 4 (2026). DOI: 10.1038/s41421-025-00865-2. © Авторы, 2026; лицензия CC BY 4.0. Русский текст адаптирован для профессионального чтения: сохранены основные механизмы и научные рисунки, пояснены термины, повторы сокращены, список сотен первичных ссылок доступен в оригинале. Отдельные редакционные замечания VesninMed прямо обозначены.
Вступление редакции VesninMed
Почему одинаково выглядящие повреждения могут зажить совершенно по-разному? В одном случае организм закроет дефект почти без видимого рубца. В другом — сформирует плотную ткань с изменённой ориентацией коллагеновых волокон, утратой придатков кожи и ограниченной подвижностью. В третьем воспаление и дефект эпителия будут сохраняться неделями. Старое объяснение «воспаление — пролиферация — созревание коллагена» правильно описывает последовательность, но практически не отвечает на вопрос, почему результат различается.
Авторы предлагают смотреть на рану как на пространственно-временную систему. Ключевыми оказываются не только количество дней после повреждения, но и точное положение клетки: эпидермис или дерма, поверхностный или глубокий слой, край раны или её центр, фасциальная ниша или зона гипоксии. И, конечно, последовательность молекулярных сигналов, которым подвергается эта клетка.
Начало основной статьи · адаптированный научный перевод
Пространственно-временная организация заживления у млекопитающих
Cell Discovery · Аграмунт, Кан и Ринкевич, 2026. Ниже передан научный материал исследования с терминологическими пояснениями; дополнения редакции отмечены отдельно.
Основная идея обзора: заживление — не один линейный процесс
Заживление повреждений у млекопитающих опирается на четыре перекрывающиеся фазы: гемостаз, воспаление, пролиферацию и ремоделирование. Авторы предлагают объединить их понятием spatiotemporal clocks — пространственно-временные «часы» (метафора, обозначающая согласованную по месту и времени смену сигнальных программ, а не наличие одной молекулы-таймера).
Организм должен сдержать кровотечение, очистить рану, привлечь иммунные клетки, восстановить эпидермальный барьер, сформировать сосуды, заполнить дефект внеклеточным матриксом и затем перестроить ткань. При этом сигналы не включаются одновременно во всех слоях кожи. Волна миграции кератиноцитов должна совпасть с подготовкой поверхности раны; активность миофибробластов — с необходимостью её сокращения, но не продолжаться бесконтрольно после закрытия.
Исход определяется не столько наличием отдельно взятых факторов роста, сколько их пространственной локализацией, амплитудой и длительностью действия. Один и тот же путь, например Wnt/β-катенин, в разных условиях способствует либо образованию новых структур кожи, либо накоплению соединительной ткани.
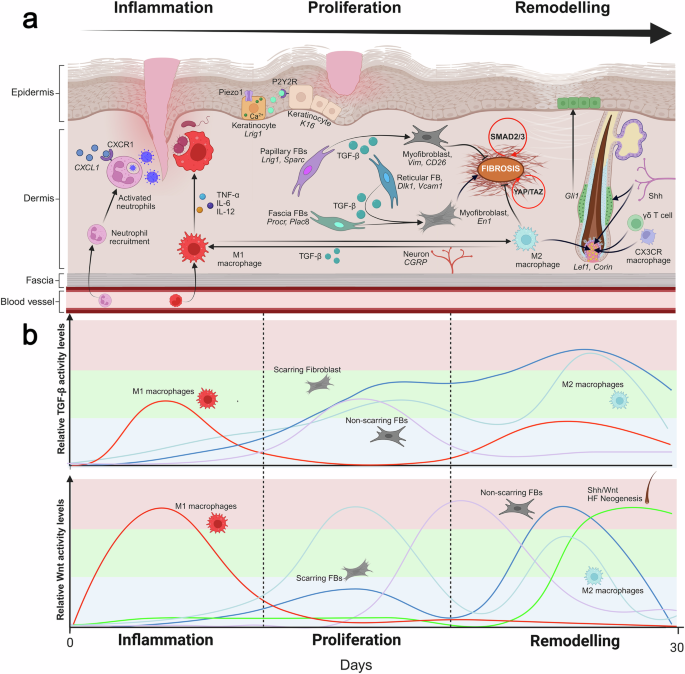
От тромбоцитов до грануляционной ткани: временная координата
Гемостаз начинается сразу после повреждения: сосудистая реакция, активация тромбоцитов, формирование фибринового сгустка. Помимо механического закрытия кровоточащего сосуда формируется временный внеклеточный матрикс, по которому будут мигрировать клетки. Тромбоциты и повреждённые ткани выделяют сигнальные молекулы, вовлекающие сосудистые и иммунные элементы.
На стадии воспаления нейтрофилы и макрофаги помогают ограничивать микробную нагрузку и удалять повреждённые компоненты. Среди значимых медиаторов — TGF-β (трансформирующий фактор роста бета), PDGF (тромбоцитарный фактор роста), воспалительные цитокины и хемокины — молекулы, задающие направление миграции клеток. Макрофаги здесь не только «уборщики»: они координируют переход к восстановлению.
Во время пролиферации кератиноциты закрывают поверхность дефекта, фибробласты участвуют в формировании внеклеточного матрикса, эндотелиальные клетки образуют новые капилляры. Ангиогенез (образование кровеносных сосудов) во многом регулируется VEGF-A — сосудистым эндотелиальным фактором роста; участвуют также FGF-2 и PDGF. Сосудистая сеть грануляционной ткани вначале бывает плотнее, чем в неповреждённой коже.
При ремоделировании меняются состав и пространственная организация матрикса, плотность клеток и сосудов, ориентация коллагеновых волокон. Но «ремоделирование» — не синоним полного возвращения нормального строения: функциональная ткань и рубец могут иметь существенно разные механические и биологические свойства.
На всех стадиях работают взаимосвязанные пути TGF-β, Wnt/β-катенин, ERK, Smad, YAP/TAZ. Их действие зависит от времени и клеточного контекста. Поэтому терапевтический принцип «больше стимуляции — быстрее заживление» биологически не обоснован без знания целевого пути, фазы и состояния ткани.
Пространственная координата: что происходит на краю раны и в её центре
Край раны и её центр — не равноценные среды. У края кератиноциты должны мигрировать, формируя фронт реэпителизации; дальше от края часть клеток интенсивно делится, обеспечивая пополнение. Эти процессы требуют разных механических условий, контактов с матриксом и внутриклеточных сигналов.
Среди ранних механочувствительных механизмов авторы выделяют канал PIEZO1, реагирующий на деформацию клеточной мембраны. Его активация в кератиноцитах может запускать изменения концентрации внутриклеточного кальция (Ca²⁺). Через выделение АТФ и пуринергические рецепторы P2Y2 соседние клетки получают сигнал, помогающий согласовать коллективное движение.
Кератиноциты мигрирующего фронта, в том числе с маркером K16, демонстрируют более устойчивые колебания кальциевого сигнала, тогда как расположенные дальше клетки с маркером Lrig1 могут получать кратковременные импульсы, сопряжённые с пролиферацией. Эта организованная неодновременность позволяет ткани одновременно закрывать дефект и создавать клеточный резерв.
Для прикрепления к временной фибриновой матрице клетки меняют набор интегринов — мембранных белков адгезии. На переднем крае уменьшается зависимость от прежних структур базальной мембраны, увеличивается взаимодействие с матриксом раны. Металлопротеиназы матрикса (например, MMP-1) помогают перестраивать окружающую среду, обеспечивая миграцию.
Фибробласты неодинаковы: папиллярные, ретикулярные и фасциальные
Название «фибробласт» кажется единым, но за ним скрывается несколько популяций с различным происхождением, расположением и функциями. Папиллярные фибробласты находятся преимущественно в поверхностных отделах дермы и связаны с поддержанием её архитектуры и ремоделированием. В работах по одиночным клеткам у них описывают маркеры Sparc, Col3a1 и Lrig1.
Ретикулярные фибробласты более глубокой дермы (среди маркеров Dlk1, Cxcl12, Vcam1) участвуют в миграции, синтезе матрикса и сократительных событиях раннего восстановления. Фасциальные фибробласты (Plac8, Procr/CD201, Sfrp2) способны быстро мобилизовать компоненты внеклеточного матрикса и участвуют в заполнении повреждения.
Миофибробласт — функциональное состояние, которое могут приобретать клетки разных линий. Он сочетает синтез матрикса и способность развивать сократительное усилие. В качестве маркеров часто исследуют ACTA2 (α-SMA, альфа-актин гладких мышц), POSTN (периостин) и некоторые программы, связанные с EN1/Engrailed-1. Однако одиночный маркер никогда полностью не определяет биологическую судьбу клетки.
Пространственная специализация подтверждается не только анализом генов. В экспериментах с переносом популяций фибробластов между анатомическими областями получались структуры, напоминавшие их место происхождения. Это указывает на устойчивые особенности клеточных линий, сформированные ещё во время развития организма.
После повреждения клетки перемещаются к ране по градиентам PDGF и TGF-β, прикрепляются к временному матриксу через интегрины и меняют программу по мере продвижения к центру. Напряжение на краях, в частности через путь RhoA/ROCK, способно усиливать переход к сократительному фенотипу. В области с иными механическими условиями большее значение может приобретать синтез матрикса.
В работах на животных описан эффект fascia swarming — коллективного перемещения фасциальных фибробластов, удерживающихся друг с другом, в частности через N-кадгерин. Они могут доставлять в рану уже сформированный матрикс из глубже расположенных тканей. Это существенно сложнее старой картинки, где «фибробласты просто приходят и делают коллаген».
Почему кожа иногда может восстанавливать волосяные фолликулы
Для обычного рубца характерна утрата части нормальных структур: волосяных фолликулов, желёз, сложного рельефа дермоэпидермального соединения. Но исследования на молодых мышах показали необычное явление — WIHN, wound-induced hair follicle neogenesis (новообразование волосяных фолликулов после ранения). В достаточно крупных полнослойных ранах у определённых экспериментальных животных в поздней фазе ремоделирования могут появляться новые фолликулы, проходящие обычные циклы роста волос.
Эффект зависит от размера дефекта и локальной среды. В центре крупных ран формируются иные градиенты сигналов и механического напряжения, чем в малых ранах. Среди участников процесса описаны γδ-Т-лимфоциты, макрофаги, Wnt/β-катенин, Shh (Sonic hedgehog — сигнальный белок «соник-хеджхог»), FGF9 и другие молекулы, обеспечивающие взаимодействие эпителия с дермой.
В этом контексте особенно поучительна неоднозначность Wnt: длительная активация пути в одном клеточном окружении поддерживает фиброз, но вместе с определёнными сигналами Shh и Blimp1 может участвовать в формировании дермального конденсата и будущего фолликула. «Включить Wnt» — не медицинская стратегия без понимания нужной клетки, места и времени.
Волосяной фолликул сам является своеобразным регенераторным узлом. Клетки стволовых ниш фолликула, включая Gli1-положительные популяции, способны менять направление дифференцировки при повреждении. В небольшом клиническом исследовании трансплантация фолликулов в зрелые рубцы человека сопровождалась изменением архитектуры дермоэпидермальной границы, сосудистости и организации коллагена.
Эти сведения важны, но не должны переноситься на пациентов напрямую: WIHN особенно подробно исследовано в определённых моделях молодых мышей, тогда как человеческая кожа отличается анатомией, возрастными особенностями и способностью к восстановлению придатков.
Иммунные клетки и сенсорные нейроны — активные участники восстановления
Макрофаги управляют не только очисткой раны, но и судьбой фибробластов через TGF-β, PDGF, Wnt и другие сигнальные молекулы. В обзорах часто говорят о провоспалительных M1- и восстановительных M2-подобных состояниях. Это полезная учебная схема, однако реальные популяции макрофагов образуют континуум состояний и не сводятся к двум жёстким классам.
Регуляторные Т-лимфоциты (Treg), γδ-Т-клетки, нейтрофилы и макрофаги по-разному влияют на воспаление, размножение кератиноцитов и ангиогенез. Чрезмерное или долго сохраняющееся воспаление способно поддерживать фиброз; преждевременное подавление нужного воспалительного ответа тоже может нарушать восстановление. Для заживления критично не «убрать воспаление», а обеспечить своевременную смену программ.
Ещё один неожиданный участник — сенсорный нейрон. Авторы рассматривают данные о ноцицептивных волокнах с каналом Naᵥ1.8 и нейропептиде CGRP (кальцитонин-ген-связанном пептиде). Через рецепторный комплекс с участием RAMP1 CGRP способен изменять поведение иммунных клеток и поддерживать восстановительные процессы. В моделях дефицита сенсорной иннервации и диабетической нейропатии восстановление ткани может ухудшаться.
Таким образом, повреждение кожи — не только местная задача фибробластов: нервная, иммунная и сосудистая системы совместно определяют тканевую реакцию. Это объясняет, почему одинаковая механическая травма в условиях выраженной нейропатии, ишемии или нарушения иммунной регуляции может иметь совершенно иной исход.
Механическое напряжение: как силы становятся молекулярными сигналами
Клетка постоянно воспринимает механические свойства своей среды: натяжение, сопротивление матрикса, плотность и геометрию связей. Изменение адгезии и напряжения цитоскелета через интегрины, RhoA/ROCK, киназу фокальных адгезий FAK и транскрипционные регуляторы YAP/TAZ может менять экспрессию генов, связанных с миграцией, дифференцировкой и синтезом матрикса.
Если миофибробласт долго сохраняет сократительное состояние, а ткань получает поддерживающие профибротические сигналы, может возникнуть самоподдерживающийся цикл: жёсткий матрикс усиливает клеточное механическое напряжение, а клетки в ответ откладывают новые компоненты матрикса. Такая положительная обратная связь способствует патологическому рубцеванию.
При этом «меньше силы всегда лучше» столь же неверно, как «больше силы всегда лучше». Для закрытия раны нужны организованные сократительные процессы; проблемой может стать их сила, длительность и недостаточное завершение. Задача регенеративной биологии состоит в управлении конкретными биологическими программами, а не в отвлечённом увеличении или уменьшении механического воздействия.
Молекулярные часы № 1: ретиноевая кислота и HIF-1α
Центральный пример обзора — смена программ фибробластов, определяемая сигналами ретиноевой кислоты (retinoic acid, RA — биологически активного производного витамина А) и HIF-1α (hypoxia-inducible factor 1 alpha — регулируемого кислородом транскрипционного фактора). Они помогают согласовать фазу заживления с конкретной клеточной нишей.
В ранней воспалительной фазе, приблизительно на 1–3-и сутки в разбираемых экспериментальных моделях, активность пути RA повышается, способствуя переходу части CD201-положительных фасциальных предшественников в провоспалительные фибробласты. Эти клетки, в частности, вырабатывают хемокин CCL2, привлекающий моноциты и макрофаги.
По мере перехода к пролиферации, примерно на 3–7-е сутки, уровень соответствующей активности RA снижается, а в гипоксических (бедных кислородом) участках возрастает активность HIF-1α. Это поддерживает переход предшественников к прото-миофибробластам и миофибробластам. Они производят коллаген, фибронектин и сократительные силы, необходимые для заполнения дефекта и его сокращения.
Когда рана переходит к ремоделированию, нормальная программа требует ослабления ранних сигналов и перестройки матрикса. Длительная активация HIF-1α в неподходящее время и в неподходящей нише, согласно обсуждаемым моделям, может усиливать патологическую выработку матрикса. Недостаточное же раннее воспалительное сигнализирование может затруднять запуск восстановления.
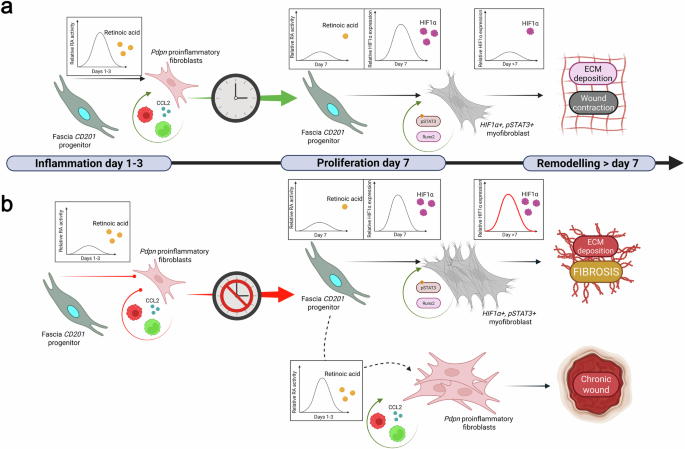
Главное в рисунке — не сама пара молекул. За счёт динамики сигналов одна популяция клеток последовательно выполняет разные задачи. Если профибротическая программа сохраняется слишком долго или включается в неподходящем месте, результатом может стать избыток матрикса; если программа восстановления не успевает включиться, дефект может оставаться открытым.
Здесь необходимо методологическое уточнение: словосочетание «молекулярные часы» является объединяющей объяснительной моделью обзора. Не все представленные этапы одинаково доказаны для каждой анатомической области человека, а приведённые сроки не следует воспринимать как строгий клинический норматив.
Молекулярные часы № 2: CXCL1, EREG и миграция кератиноцитов
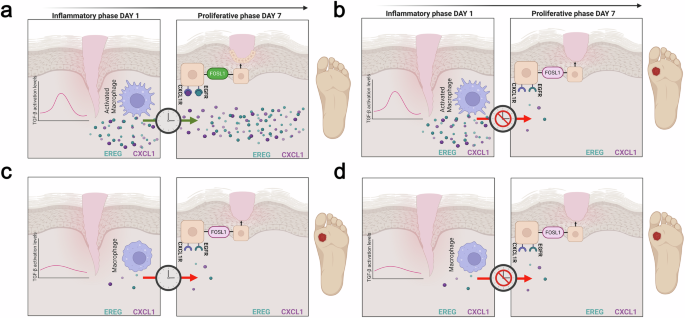
Второй механизм демонстрирует, как иммунные клетки помогают эпителию закрыть рану. Макрофаги на краю дефекта способны выделять хемокин CXCL1 и фактор EREG (эпирегулин). Их рецепторы, CXCR1 и EGFR, участвуют в передаче сигналов кератиноцитам и в регуляции белка FOSL1 — фактора, связанного с клеточной миграцией.
Это взаимодействие зависит от точного совпадения условий. Если сигналы поступают слишком рано, слишком поздно или не там, где находятся нужные кератиноциты, фронт реэпителизации не получает необходимой поддержки. Авторы обсуждают такие сбои на примерах хронических ран, включая язвы диабетической стопы.
В предложенной модели при нарушениях TGF-β-зависимых макрофагальных сигналов изменяется выделение CXCL1 и EREG. Результат — недостаточная активация рецепторов у края раны, ослабленная экспрессия FOSL1 и замедление миграции эпителиальных клеток. Таким образом, при хронической ране проблема может заключаться не просто в «нехватке коллагена», а в нарушенной координации взаимодействия клеток.
От исследований мышей к человеку: что известно и чего пока нет
Мышиная кожа стала важнейшей экспериментальной моделью, но её строение и механика отличаются от человеческих. Особенно это относится к организации глубоких слоёв, величине натяжения, особенностям сокращения ран, фолликулам и способности к WIHN. Нельзя без оговорок переносить на пациента пространственные карты, полученные в коже лабораторного животного.
Одноклеточное секвенирование РНК (single-cell RNA sequencing, scRNA-seq) позволяет описывать клеточные популяции человека и сравнивать их с мышиными. Обзор отмечает сходные траектории перехода фасциальных фибробластов к провоспалительным состояниям и миофибробластам, а также общие молекулярные признаки, например PI16 и POSTN. Однако сходство транскриптомных профилей не означает полной функциональной идентичности.
В ближайшей перспективе авторы рассматривают инженерные матриксы, фазоспецифичную доставку сигналов, управляемую модуляцию Wnt, HIF-1α, YAP и системное моделирование клеточных траекторий. Это перспективы регенеративной медицины, а не уже доказанные стандартные процедуры для клинического лечения рубцов.
Редакционный разбор: что это меняет в разговоре о рубце и массаже
Особенно важно различать три цели вмешательства. Первая — облегчение боли, зуда или дискомфорта. Вторая — улучшение подвижности и переносимости прикосновения. Третья — объективное изменение структуры рубцовой ткани, её эластичности, сосудистости или коллагеновой организации. Доказательства по первой цели нельзя автоматически переносить на третью.
Систематический обзор исследований массажа ожоговых рубцов, опубликованный в 2024 году, сообщал об улучшениях некоторых субъективных симптомов, но не давал столь же уверенной картины структурных изменений. Это нужно помнить, когда из красивой схемы молекулярных путей пытаются вывести слишком категоричные практические обещания.
В научном образовании ценность данной работы состоит прежде всего в разрушении упрощённой схемы «травма — синтез коллагена — рубец». Вместо неё появляется картина последовательных клеточных решений и конкурирующих траекторий: восстановление, фиброз, хроническая рана. Она объясняет, почему идея единого механического «устранения рубцовой ткани» не выдерживает современной биологической проверки.
Краткий словарь и источники для углублённого чтения
Внеклеточный матрикс (ECM) — сеть структурных белков и других молекул, окружающая клетки и участвующая в передаче сигналов. Миофибробласт — клеточное состояние с выраженными матрикс-синтетическими и сократительными функциями. Реэпителизация — восстановление эпителиального покрова раны. Механотрансдукция — преобразование механической информации в внутриклеточные биохимические сигналы. Фиброз — патологическое накопление и перестройка соединительнотканного матрикса. CD201/PROCR — молекулярный маркер, применяемый для выделения некоторых популяций предшественников. HIF-1α — фактор, участвующий в ответе клетки на доступность кислорода. RA — ретиноевая кислота. YAP/TAZ — регуляторы клеточной транскрипции, чувствительные к механическому контексту. WIHN — образование волосяных фолликулов заново в зажившей ране в определённых моделях.
Основной источник: Agramunt J., Kang Y., Rinkevich Y. Spatiotemporal dynamics of mammalian wound healing. Cell Discovery, 2026. Первичное исследование фасциальных предшественников: Correa-Gallegos и соавт. CD201+ fascia progenitors choreograph injury repair. Nature (2023). Механотрансдукция и регенерация: Chen и соавт. Disrupting biological sensors of force promotes tissue regeneration. Nature Communications (2021). Полная библиография обзорной работы доступна на странице оригинала.
Права и изменения: оригинальный текст и его собственные иллюстрации распространяются по CC BY 4.0, если рядом с конкретным элементом не указано иное. Перевод, структурирование материала, русскоязычные пояснения и заключительные редакционные комментарии выполнены VesninMed. Это не клиническое руководство по лечению ран и не рекомендация воздействовать на открытые или нестабильные раны массажем.